微量热泳动(MST)技术:从分子互作到药物筛选的实践
一、MST实验设计的高级策略与荧光标记优化
在MST微量热泳动技术原理的实验框架下,荧光标记策略的选择直接决定了数据的可靠性与生物学相关性。MST技术要求对靶标分子进行精确的荧光标记,使其在红外温度梯度场中产生可检测的热泳动信号变化。标记方案的设计需要综合考量标记效率、位点特异性、蛋白功能完整性以及样品体系的兼容性。
1、共价标记策略的深度对比
NHS酯标记是最早应用于MST平台的共价标记方案。该方法通过NHS酯与蛋白质表面赖氨酸侧链的伯氨基反应形成稳定酰胺键。操作简便、反应条件温和是其优势,但存在根本性的位点非特异性问题,蛋白质表面分布多个赖氨酸残基,NHS酯标记会产生多位点标记的异质性混合群体,导致标记蛋白群体热泳动行为不一致。当赖氨酸残基邻近配体结合位点时,标记可能直接干扰分子识别,导致表观亲和力系统性偏低。因此,NHS酯标记更适用于表面赖氨酸分布均匀且远离功能位点的蛋白靶标,或在结构信息不充分时的初步筛选。
Maleimide标记通过特异性反应半胱氨酸残基的游离巯基实现位点选择性标记。天然蛋白表面可反应的游离半胱氨酸通常数量有限(多数少于5个),结合晶体结构或AlphaFold预测模型可精确定位标记位置。在MST结合实验流程中,Maleimide标记的关键挑战在于分子内二硫键的还原与游离巯基的暴露。操作中需使用TCEP在温和条件下还原二硫键,但TCEP残留会与Maleimide竞争巯基反应。标准流程建议使用脱盐柱快速去除还原剂后立即进行标记反应,标记效率可达60%至85%。Maleimide标记在MST蛋白小分子相互作用研究中应用广泛,尤其适合已有高分辨率结构信息的蛋白靶标。
His-tag标记使用RED-tris-NTA染料,通过镍离子配位键识别多聚组氨酸标签。这一策略的核心优势在于无需对蛋白进行共价修饰,从根本上避免了标记对蛋白功能的潜在干扰。RED-tris-NTA染料激发波长约650 nm,发射波长约670 nm,具有优异的光稳定性和高量子产率,在MST亲和力测定Kd值实验中表现出极低的批次间变异系数(通常低于5%)。该方法要求蛋白带有His-tag(通常为6×His或10×His),且溶液中不含高浓度咪唑或EDTA等干扰配位的试剂。在Monolith MST仪器操作中,His-tag标记方案可实现分钟级标记效率,是高通量化合物筛选的首选。
2、标记位点的结构导向选择
标记位点的合理选择是确保MST数据生物学相关性的关键环节。在缺乏结构信息时盲目标记,可能因标记位点位于结合界面或变构位点而干扰分子识别。基于PDB晶体结构或AlphaFold2预测模型,可通过计算分析蛋白质表面溶剂可及面积(SASA)和静电势分布,优先选择远离已知结合位点且表面充分暴露的标记区域。对于酶类蛋白靶标,应避免标记活性位点附近的赖氨酸或半胱氨酸残基;对于受体蛋白,应避开配体结合结构域。在MST膜蛋白相互作用研究中,跨膜区的标记位点选择需额外考虑跨膜螺旋的拓扑约束,标记位点应位于膜外区域,且不干扰跨膜信号传导的构象变化路径。结构导向标记还可通过定点突变验证:引入唯一可反应的半胱氨酸后比较突变体与野生型的活性差异。
3、荧光通道选择与特殊样品标记
在MST荧光标记方法的实践中,荧光通道的选择需要平衡荧光亮度、光稳定性与样品自发荧光的排除。Monolith系列仪器提供BLUE(470 nm激发)、GREEN(530 nm激发)和RED(650 nm激发)三个通道。RED通道使用Nanotemper proprietary RED染料,具有最高光稳定性和最低光漂白率,适用于绝大多数蛋白样品,尤其在含细胞裂解液等高背景荧光的复杂体系中优势明显。GREEN通道适用于使用GFP或YFP融合标签的蛋白,可直接利用荧光蛋白报告基团,避免额外标记步骤。BLUE通道适用于色氨酸固有荧光检测,但信号弱且易受缓冲液成分干扰。当样品体系存在自发荧光时,应优先选择RED通道以排除背景干扰。
膜蛋白是MST技术的特色应用领域。膜蛋白的去污剂体系(DDM、LMNG等)和纳米盘体系各有标记策略考量。去污剂体系中,去污剂胶束本身可能产生光散射干扰,需选择RED通道并优化去污剂浓度。纳米盘体系提供了更接近天然脂质双分子层的环境,但纳米盘分子量较大(约80至150 kDa),可能减小MST信号窗口。无序蛋白(IDPs)的标记需特别注意标记位点在柔性区域引起的信号波动问题,建议在较为保守的结构域进行标记。PROTAC分子具有两亲性特征,容易在溶液中形成聚集体,标记策略上通常对靶标蛋白进行荧光标记,通过三元复合物形成后热泳动行为的变化检测三元结合。核酸分子的标记可选择5'端荧光基团修饰(FAM、Cy3、Cy5等),合成时直接引入,标记效率接近100%。
4、标记效率评估与配体稀释系列设计
标记效率的定量评估是MST实验质量控制的重要环节。荧光亮度测定通过比较标记蛋白与已知浓度标准染料的荧光强度,可计算出标记蛋白的有效荧光浓度。当标记效率低于50%时,未标记蛋白会与标记蛋白竞争结合配体,导致表观Kd值偏高。配体稀释系列设计上,16点稀释梯度的浓度范围选择需要基于预期Kd值的合理预估。对于预期Kd值在nM级别的强结合体系,配体浓度范围应覆盖0.05倍Kd至100倍Kd,确保结合曲线从低于10%结合率的基线区域到高于90%结合率的饱和区域均被覆盖。当缺乏Kd预估信息时,建议使用跨度5至6个数量级的宽浓度范围进行初步实验,根据初步结果缩窄浓度区间进行精筛。
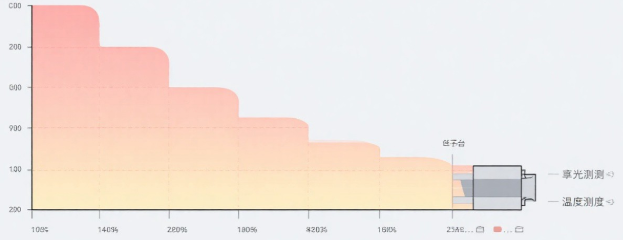
图1:MST技术原理示意图。红外激光在毛细管内产生局部温度梯度,荧光标记分子在温度场中的热泳动行为变化反映了分子大小、水化层和电荷态的综合变化,从而实现结合亲和力的定量检测。
二、MST数据采集的精细操作与质量控制
1、Monolith仪器日常操作要点
Monolith MST仪器操作的核心在于毛细管选择与红外激光参数的精确设定。标准毛细管(Monolith NT.Standard Treated Capillaries)适用于多数可溶性蛋白样品,其内壁经过特殊处理以减少非特异性吸附。疏水毛细管(Monolith NT.Hydrophobic Capillaries)专为强疏水性蛋白或含高浓度去污剂的膜蛋白样品设计,内壁的疏水涂层可防止蛋白与玻璃壁的疏水相互作用导致的样品富集。活化毛细管(Monolith NT.Active Capillaries)表面经过聚L-赖氨酸修饰,带正电荷的表面可吸引带负电的蛋白或核酸分子,适用于酸性等电点蛋白和核酸样品。毛细管类型的选择应基于预实验中的荧光信号扫描结果,若标准毛细管出现样品吸附导致的荧光富集现象,应依次尝试疏水或活化毛细管。
2、毛细管吸附现象的识别与处理
样品在毛细管壁上的非特异性吸附是MST实验中最常见的异常来源。吸附现象在荧光扫描阶段表现为管内荧光分布不均匀,正常样品在毛细管中的荧光应呈均匀分布,而吸附样品会在局部出现荧光富集或沿管壁呈月牙形分布。吸附还会导致MST测量时热泳动信号失真,表现为轨迹不规则或信号幅度异常增大。处理方法包括:在缓冲液中添加0.05%至0.1% Tween-20或Pluronic F-127降低表面吸附;提高盐浓度(NaCl至150至300 mM)屏蔽静电相互作用;添加BSA(0.1至0.5 mg/mL)作为载体蛋白竞争吸附位点。
3、MST Power设置的优化策略
红外激光功率(MST Power)决定了温度梯度的幅度。Monolith仪器提供20%、40%、60%、80%四档功率选择。20%功率产生的温度梯度较小(约2至4 K),适用于对温度敏感的样品或弱温度响应体系,可减少热变性风险。40%功率是常规推荐设置,温度梯度约4至8 K,平衡了信号幅度与样品稳定性。60%和80%功率适用于信号窗口较窄的体系,通过增大温度梯度提高检测灵敏度,但需警惕高温可能引起的蛋白变性或聚集。功率选择应遵循最低有效功率原则,在保证信噪比大于5的前提下,尽量使用较低功率。对于MST亲和力测定Kd值实验,建议在40%功率下进行预实验,若信号窗口不足,逐步提高功率至60%或80%。
4、荧光信号稳定性与质量评估
MST测量中,荧光信号的稳定性直接影响数据质量。MST-on阶段(红外激光开启前的基线阶段)的荧光信号应保持稳定,漂移幅度不应超过初始荧光的5%。MST-off阶段(激光关闭后的恢复阶段)应观察到荧光信号向基线回归的趋势,若信号无法恢复,提示样品发生了不可逆的热变性或聚集。Monolith NT.Auto仪器内置的Attention Score系统可自动评估每根毛细管的数据质量,综合考量信号稳定性、轨迹规则性和荧光强度三个维度。Attention Score低于10的样品应标记为低质量数据,需要排查原因后重新测量。
5、批次间变异的控制与异常诊断
MST数据的批次间变异主要来源于标记效率波动、样品制备差异和仪器状态变化。控制策略包括:每批次实验设置内参样品(已知Kd值的标准互作对),用于监控实验系统的一致性;每批次至少进行3次独立实验(不同天、不同标记批次),取拟合Kd值的加权平均;使用同一批次的毛细管和缓冲液减少耗材变异。在MST数据拟合分析中,多批次数据的合并应使用加权拟合,以各批次的拟合方差为权重,避免低质量数据对总体Kd值的过度影响。
常见异常数据中,信号漂移是最频发的干扰因素。基线阶段荧光持续上升或下降通常由光漂白效应引起,荧光基团在持续激发下发生不可逆漂白。解决方法包括降低激发光强度、缩短测量时间或更换光稳定性更好的染料(如从GFP切换至RED染料)。样品聚集导致的信号跳变表现为MST轨迹中出现突然的荧光尖峰或不规则波动,通常由温度梯度触发蛋白聚集所致。处理策略包括降低蛋白浓度、添加稳定剂或更换缓冲液pH。在MST药物筛选应用中,化合物本身引起的聚集也是常见问题,高浓度化合物(尤其大于50 μM时)可能形成动态聚集体,导致浓度依赖性的信号异常,需通过添加0.01% Triton X-100或DLS预筛化合物聚集性来解决。
三、MST数据高级分析与模型拟合
1、从原始荧光轨迹到结合曲线
MST测量的原始数据是每根毛细管中荧光强度随时间变化的轨迹。数据处理的第一步是计算归一化荧光值Fnorm,即MST-on阶段(激光开启后温度梯度稳定时)的荧光与MST-off阶段(激光开启前基线)的荧光之比,通常以千分比表示。Fnorm值反映了配体结合后标记分子热泳动行为的变化。在MST数据拟合分析中,Hot Region的选择是关键步骤。Hot Region是指MST-on阶段中荧光信号达到稳定平台的时间窗口,通常选择激光开启后5至15秒的区间。Hot Region应避开信号瞬态波动阶段和信号不稳定阶段。软件提供自动Hot Region选择功能,但建议人工检查每个浓度点的轨迹,确保一致性。
2、不同结合模型的拟合方法
MST数据拟合分析中最常用的模型是单一结合位点模型(1:1 binding model)。该模型假设标记分子与配体以1:1化学计量比结合,拟合方程为:Fnorm = Fbaseline + Famplitude × [L] / (Kd + [L])
其中[L]为自由配体浓度,Fbaseline为无配体时的基线Fnorm值,Famplitude为饱和结合时的Fnorm变化幅度。该模型适用于多数蛋白-小分子互作和蛋白-蛋白互作体系。当体系中存在多个结合位点时,需使用多位点结合模型。两位点模型可拟合两个独立的Kd值,适用于蛋白存在两个不等价结合位点的情况。Hill模型引入Hill系数nH描述协同性结合:Fnorm = Fbaseline + Famplitude × [L]^nH / (EC50^nH + [L]^nH)
Hill系数大于1提示正协同结合,小于1提示负协同。在MST蛋白小分子相互作用研究中,Hill系数显著偏离1时应检查是否存在蛋白聚集或多聚化现象。
3、Kd值置信区间与异常点处理
Kd值的置信区间计算基于拟合残差的统计分析。MST.Affinity Analysis软件使用Bootstrap重采样方法,通过对原始数据进行1000次以上的随机重采样和拟合,构建Kd值的分布直方图,从中提取95%置信区间。置信区间宽度反映了数据的精密度,若95%置信区间跨越超过一个数量级,提示数据质量不足或模型选择不当。统计显著性评估可使用F检验比较不同模型的拟合优度。在报告MST亲和力测定Kd值时,应同时报告Kd值、95%置信区间、拟合优度R²和实验次数n。
异常数据点(outlier)的排除需要谨慎操作,避免引入主观偏差。客观的异常值识别方法包括:使用Grubbs检验或Dixon Q检验进行统计学判定;比较同一浓度点重复测量值的标准差,超过3倍标准差的点可视为异常;观察结合曲线的整体趋势,偏离趋势线的点需重点核查。排除异常点后应重新拟合,比较Kd值的变化幅度,若排除一个点导致Kd值变化超过2倍,说明该点对拟合有过度影响,需要特别记录并评估。
4、软件高级功能与跨技术验证
MST.Affinity Analysis软件提供批量分析功能,可同时处理数百个结合曲线。多实验比较功能可将不同条件的实验结果叠加显示,便于直观比较Kd值差异。数据导出支持CSV和Excel格式。在MST与SPR技术比较的框架下,MST数据的交叉验证应考虑不同技术测量原理差异带来的系统性偏差。SPR测量的是表面结合动力学(kon和koff),而MST测量的是溶液中的平衡亲和力(Kd),两者在理想情况下应满足Kd = koff / kon。当结果不一致时,需排查表面固定对蛋白构象的影响、MST中标记对结合的干扰、以及两种技术中缓冲液条件的差异。
5、热泳动信号机理的深入理解
MST信号的产生是多种物理效应的综合贡献。温度梯度中分子的热泳动由Soret效应描述:ST = DT / D,其中DT为热扩散系数,D为普通扩散系数。分子在温度梯度中的迁移受多种因素影响。水化层变化是最主要的贡献因素,温度升高时分子周围的水化层结构发生变化,改变了分子的有效流体力学半径和溶剂化自由能。电荷态和构象变化(如温度诱导的蛋白unfolding或别构转换)也贡献于信号变化。这些效应的综合决定了MST信号的幅度和方向,理解这些机理有助于解释复杂的MST轨迹和异常信号模式。
图2:MST数据拟合与Kd值测定。通过16点稀释梯度的Fnorm值拟合结合曲线,单一结合位点模型给出平衡解离常数Kd值及95%置信区间,拟合优度R²反映数据质量。
四、MST在药物筛选与优化中的深度应用
1、基于MST的化合物片段筛选
在MST药物筛选应用中,片段筛选(Fragment-based screening)是药物发现的早期关键步骤。片段分子通常分子量小(110至300 Da)、结合亲和力弱(mM级别),这对检测技术的灵敏度提出了极高要求。MST技术在此场景下的优势在于其溶液相检测特性,不同于SPR的表面固定,MST避免了表面效应导致的弱亲和力假阳性。在MST微量热泳动技术原理的支撑下,片段筛选的实验设计需特别优化浓度范围:片段浓度通常从10 mM起始稀释至低μM范围,覆盖4至5个数量级。由于片段的弱亲和力,信号窗口可能很窄(Fnorm变化2至5个单位),需使用较高MST Power(60%至80%)和RED通道最大化信噪比。筛选命中标准通常设定为结合率超过基线的2倍标准差,且拟合R²大于0.7。
2、MST在PROTAC分子设计中的独特价值
PROTAC(蛋白降解靶向嵌合体)分子的设计涉及三元复合物的形成,PROTAC同时结合靶标蛋白和E3泛素连接酶。MST在表征这一过程时具有独特优势。二元结合的MST检测分别测定PROTAC与靶标蛋白、PROTAC与E3连接酶的亲和力,确定二元Kd值。三元复合物的MST表征更为复杂:将PROTAC作为恒定浓度的桥连分子加入标记的靶标蛋白与未标记的E3连接酶的滴定中,通过靶标蛋白热泳动行为的变化检测三元复合物形成。三元Kd值与二元Kd值的比值可评估协同性(cooperativity factor α),α小于1表示正协同,α大于1表示负协同。在MST数据拟合分析中,三元体系的拟合需使用三元结合模型,考虑饱和度和竞争效应。钩效应(hook effect)在高PROTAC浓度时表现为三元复合物解离形成二元复合物,MST可清晰检测这一浓度依赖的转变。
3、膜蛋白药物筛选的技术要点
MST膜蛋白相互作用研究是MST技术的特色应用领域。膜蛋白药物筛选面临的核心挑战在于维持膜蛋白的天然构象。去污剂体系中,DDM和LMNG是最常用的增溶剂,但去污剂胶束可能干扰配体结合并产生光散射。MST实验中需优化去污剂浓度,通常维持在CMC的1至3倍,既能稳定蛋白又不过度增加背景噪声。纳米盘体系提供了更接近天然脂质双分子层的环境,磷脂组成可调控,有利于膜蛋白保持功能构象。
4、靶向RNA小分子药物与免疫检查点抑制剂
RNA作为药物靶标的研究日益受到关注,MST在RNA-小分子相互作用检测中发挥着重要作用。RNA荧光标记可选择5'端FAM或Cy5标记,通过体外转录后酶法引入或化学合成直接修饰。RNA的标记效率通常接近100%,且标记位置在末端,对RNA三维结构影响较小。在MST结合实验流程中,RNA-小分子检测需注意RNA的结构稳定性,需在含Mg²⁺(1至5 mM)的缓冲液中维持RNA折叠,避免RNase污染。小分子化合物的溶解度限制是RNA筛选的常见问题,DMSO浓度需在所有稀释点保持一致。
PD-1与PD-L1免疫检查点通路的阻断剂研发是肿瘤免疫治疗的热点。MST在药物筛选应用中可用于表征PD-1与PD-L1的结合亲和力,筛选小分子或抗体类阻断剂。实验设计上,将标记的PD-1与不同浓度的PD-L1滴定,测定天然结合Kd值。随后在固定浓度的PD-1与PD-L1复合物中加入不同浓度的候选阻断剂,检测竞争性置换效应,阻断剂结合后导致复合物解离,标记蛋白的热泳动行为回归至游离态特征。这一竞争性MST实验可同时获得阻断剂的IC50值和推算的Ki值。
5、结合特异性验证与筛选工作流程
竞争性MST实验是验证结合特异性的重要手段。在正结合位点验证中,将过量未标记的已知正结合配体加入MST反应中,若标记配体的信号被竞争性置换,证实标记配体结合于正结合位点。在别构位点研究中,别构配体不直接竞争正结合位点,而是通过构象变化影响正结合配体的亲和力。MST可检测别构配体存在时正结合配体Kd值的变化,若Kd值显著偏移(通常2倍以上),提示别构效应。这一策略在MST蛋白小分子相互作用研究中尤为有价值,可区分直接结合和间接效应。
从初筛到先导优化的MST工作流程需要平衡通量、精度与成本。初筛阶段使用384孔板格式,每个化合物单浓度检测,通量可达每日500至1000个化合物。命中验证阶段对初筛命中物进行16点稀释梯度MST检测,获得Kd值并排除假阳性。先导优化阶段对结构类似物进行系统性的Kd值测定,构建构效关系。在MST与SPR技术比较的框架下,MST适合早期高通量筛选,SPR适合后期动力学表征,两者互补使用可提高药物发现效率。
图3:MST在药物筛选与膜蛋白研究中的应用。MST技术可兼容去污剂体系和纳米盘体系,支持膜蛋白-配体相互作用的高通量筛选与定量表征。
五、MST在复杂生物体系与前沿研究中的应用
1、原位细胞裂解液中的MST检测
内源性蛋白的亲和力测定一直是生物物理学的重要挑战。MST技术允许在细胞裂解液中直接检测内源性表达蛋白,无需纯化步骤。这一策略的关键在于利用RED-tris-NTA染料对内源性His-tag蛋白进行标记,在复杂的裂解液背景中实现特异性荧光检测。裂解液中的大量杂蛋白、核酸和脂质成分会产生背景荧光和光散射,需通过离心(14,000 g,10分钟)和0.22 μm过滤清除不溶性成分。在MST微量热泳动技术原理的框架下,裂解液的高黏度和复杂组成可能改变热泳动行为,需用表达空载体(mock)的裂解液作为阴性对照确认信号特异性。
2、蛋白复合物组装顺序与协同性表征
多亚基蛋白复合物的组装通常具有层次性和协同性。MST可通过分步滴定策略解析组装顺序:先将标记的支架蛋白与第一个结合伙伴滴定,测定二元Kd值;随后在固定的二元复合物浓度下加入第二个结合伙伴,测定三元Kd值。若三元Kd值显著低于二元Kd值,提示正协同组装,第一个伙伴的结合诱导构象变化促进第二个伙伴的结合。在MST数据拟合分析中,多步组装的拟合需使用序贯结合模型,考虑各步骤的饱和度交叉影响。这一策略在信号转导复合物(如凋亡体apoptosome、炎症体inflammasome)的组装研究中具有重要应用。
3、抗体-抗原相互作用与表位分组
抗体药物研发中,表位分组(epitope binning)是确定不同抗体结合表位重叠关系的关键实验。MST可通过竞争性实验实现表位分组:将标记抗原与第一抗体饱和结合后,加入第二抗体,若第二抗体仍能结合(Fnorm值进一步变化),提示两个抗体结合不同表位(非竞争性);若Fnorm无变化,提示表位重叠(竞争性)。在MST结合实验流程中,抗体配对筛选可系统性地评估数十至上百个抗体组合,筛选具有非竞争性表位的配对,用于双特异性抗体或鸡尾酒疗法的设计。MST测定的抗体-抗原Kd值通常在pM至nM范围,MST的高灵敏度可准确区分亚nM级别的亲和力差异。
4、病毒颗粒与宿主受体结合测定
SARS-CoV-2刺突蛋白(Spike protein)与ACE2受体的相互作用是理解病毒感染机制和开发中和抗体的核心靶标。MST在此研究中具有独特优势,可在溶液相中测量全长刺突蛋白(三聚体,约400 kDa)与ACE2的结合,避免了SPR表面固定对大型糖蛋白构象的潜在影响。实验中,将RED标记的ACE2与不同浓度的刺突蛋白(野生型或突变体)滴定,测定各变异株的ACE2结合Kd值,评估突变对感染性的影响。
5、脂质体-蛋白相互作用与多价结合
脂质组成对蛋白结合的影响是膜生物学的重要研究问题。MST可检测蛋白与不同组成脂质体的结合差异。实验策略是将标记蛋白与不同磷脂组成的脂质体滴定,通过蛋白结合脂质体后热泳动行为的变化测定结合亲和力。小脂质体(100 nm)的信号窗口通常优于大脂质体。在MST药物筛选应用的拓展中,脂质体-蛋白MST检测可用于筛选影响蛋白-膜相互作用的化合物。
多价结合在MST中表现为特殊的信号模式。当一个配体分子同时结合多个标记蛋白时(如多聚化配体、抗体、纳米颗粒),Fnorm变化幅度可超过单一结合的预期值,且结合曲线可能呈现陡峭的转变。在MST数据拟合分析中,多价结合的拟合需使用多位点或交联模型。聚集体在MST中的信号特征包括荧光轨迹不规则波动、MST-on阶段信号幅度异常大、MST-off阶段无法恢复基线。
6、智能水凝胶与PROTAC前沿应用
智能水凝胶作为药物递送载体,其与蛋白的相互作用影响载药效率。MST可表征温度响应型水凝胶在相变温度附近与蛋白结合亲和力的变化,需将实验温度设定在相变温度以下和以上分别测量结合Kd值。
蛋白质降解靶向嵌合体(PROTAC)领域的前沿研究对三元复合物的动力学表征提出了更高要求。MST可实时监测三元复合物的形成和解离动力学,通过时间分辨MST追踪PROTAC加入后组装的时序过程。时间分辨数据可拟合为组装速率常数,补充平衡Kd值无法提供的动力学信息,为PROTAC分子的构效关系优化提供新的参数维度。
六、MST技术比较分析与未来发展趋势
1、MST与主流互作检测技术的全面对比
MST与SPR技术比较是生物分子互作检测领域最常被讨论的话题之一。SPR(表面等离子共振)通过在金传感器表面固定一个分子,流过另一分子的溶液,实时监测结合和解离过程,提供动力学参数(kon和koff)和平衡Kd值。MST则在溶液相中测量平衡亲和力,不涉及表面固定。在样品需求方面,SPR通常需要50至200 μg蛋白用于表面固定和再生优化,MST仅需标记蛋白约2至5 μg(每根毛细管约4 nL样品),样品消耗低1至2个数量级。在通量方面,SPR可实现每日约384个化合物的筛选,Monolith NT.Auto可达到每日200至300个样品。
MST与BLI(生物膜干涉技术)的比较中,BLI通过光纤传感器尖端固定的分子层干涉光路变化检测结合。BLI与MST的相似之处在于都优先测量亲和力,但BLI使用传感器尖端固定,存在表面效应风险。BLI的优势在于通量高(Octet HTX系统每日可测384个样品)和操作简便,适合抗体筛选和粗样品检测。MST的优势在于溶液相检测和更低样品消耗,且对小分子(小于300 Da)检测的灵敏度通常优于BLI。
MST与ITC(等温滴定微量热法)的互补策略中,ITC直接测量结合反应的热力学参数(ΔH、ΔG、ΔS)和Kd值,无需标记。ITC的金标准地位源于其完全无标记特性,但样品消耗大且通量低。MST与ITC互补:MST用于高通量筛选,ITC用于关键命中物的热力学表征。
MST与荧光偏振(FP)的比较中,FP通过测量荧光分子在偏振激发光下的发射偏振变化检测分子大小变化。FP与MST都使用荧光标记,但检测原理不同,FP基于分子旋转扩散(与分子量直接相关),MST基于热泳动(受水化层、电荷、构象多重影响)。FP对小分子-蛋白互作的检测灵敏度受限于分子量比,当两个分子量接近时信号窗口极小。MST在蛋白小分子相互作用研究中不受此限制。
| 技术参数 | MST | SPR | BLI | ITC |
|---|---|---|---|---|
| 检测原理 | 热泳动 | 表面等离子共振 | 生物膜干涉 | 等温滴定微量热 |
| 标记要求 | 荧光标记 | 表面固定 | 表面固定 | 无需标记 |
| 样品消耗 | 2-5 μg | 50-200 μg | 20-50 μg | 50-200 μg |
| 通量(样品/日) | 200-300 | 384 | 384 | 8-20 |
| 提供参数 | Kd | Kd, kon, koff | Kd, kon, koff | Kd, ΔH, ΔS |
| 溶液相检测 | 是 | 否 | 否 | 是 |
2、Label-free MST与标记策略的技术路线比较
Label-free MST(NT.LabelFree仪器)利用色氨酸的固有紫外荧光(280 nm激发)实现无标记检测,避免了荧光标记对蛋白功能的潜在影响。但色氨酸荧光信号弱,需要较高蛋白浓度(μM级别),且不能用于不含色氨酸的分子。在MST荧光标记方法的选择中,Label-free适合验证标记不影响结合活性的对照实验,标记MST适合高通量筛选和低浓度检测。
3、仪器自动化与AI辅助分析的发展
Monolith NT.Auto的自动化进样系统标志着MST技术进入高通量时代。96通道自动进样器可实现连续无人值守测量,每日通量可达200至300个样品。自动化的关键挑战在于样品在微量孔板中的稳定性,长时间运行中蛋白可能发生降解或聚集,需通过温度控制(4°C进样仓)和抗氧化添加剂维持样品状态。新一代仪器正在开发384孔板兼容性和更短测量周期。人工智能技术在MST数据分析中的应用也在兴起:机器学习算法可自动识别异常轨迹,深度学习模型可从MST轨迹中区分结合信号与非特异性效应,提高拟合准确性。
4、MST在精准医疗伴随诊断中的潜在应用
精准医疗的发展对快速、低样品量的生物标志物检测提出了需求。MST技术因其低样品消耗和溶液相检测特性,在伴随诊断(companion diagnostics)领域具有潜在应用价值。例如,在肿瘤患者的基因突变蛋白与靶向药物的亲和力检测中,MST可使用患者来源的少量活检样品(通过裂解液MST检测方案)评估药物敏感性,指导个体化用药方案选择。临床级MST检测需满足标准化要求,这一方向的发展有赖于仪器标准化和试剂批间一致性的完善。
 X