细胞迁移及侵袭实验技术的应用
一、细胞迁移侵袭研究的前沿视角与技术整合趋势
细胞迁移与侵袭作为肿瘤生物学研究的核心表型读出指标,在肿瘤转移机制探索、药物靶点验证以及免疫细胞趋化功能评估中扮演着不可替代的角色。近五年来,随着高通量表型筛选需求不断攀升,传统的单一检测模式已逐渐向多维度联合检测体系过渡。在科研实践中,研究者面临的挑战不再局限于"能否做出来",而是转向"如何让数据更可重复、更具有统计学说服力、更能反映体内真实生物学过程"。
从技术维度看,当前主流的细胞迁移及侵袭检测手段主要围绕Transwell迁移实验(Boyden小室检测)和划痕修复实验两大体系展开,辅以基质胶侵袭实验模拟体内基底膜穿越过程,结合时间lapse显微成像实现动态追踪,最终通过ImageJ迁移定量分析获得可发表的数据。这五种技术路径各有优势和局限,理解它们在不同研究场景下的适用边界,是设计高质量实验方案的前提。
核心提示:选择迁移或侵袭检测方法时,首要考虑因素是研究问题的生物学层次,是关注单纯运动能力(迁移),还是涉及胞外基质降解能力的复合运动(侵袭),这直接决定了实验体系的设计方向。
趋化因子梯度的建立是所有迁移实验的物理基础,但不同实验体系对梯度的依赖程度差异显著。在Transwell体系中,上下室之间的浓度差是驱动细胞穿膜的核心动力;而在划痕实验中,伤口释放的因子自分泌梯度同样影响修复速率。理解这些细微差别,对于正确解读实验结果至关重要。
二、Transwell迁移实验的深度优化策略
Transwell迁移实验作为Boyden小室检测的标准化升级版本,在肿瘤转移机制研究中应用最为广泛。然而,大量发表的文献中存在实验参数不统一、可重复性差的共性问题。以下从多个关键环节展开深度剖析。
1、膜孔径选择与细胞类型匹配
聚碳酸酯膜或PET膜的孔径是决定实验成败的首要参数。常见规格包括3μm、5μm、8μm和12μm,选择逻辑并非随意。具体来说,3μm孔径适合多数免疫细胞(如T淋巴细胞、中性粒细胞)的迁移检测,因为这类细胞体积小、变形能力强;5μm孔径适用于单核细胞及部分树突状细胞;8μm是肿瘤细胞迁移实验中最常用的规格,适用于MCF-7、MDA-MB-231、A549等主流肿瘤细胞系;12μm则适用于体积较大的细胞或需要降低穿膜难度的初筛实验。
一个容易被忽视的细节是膜孔径与细胞核直径的比例关系。当孔径与细胞核直径接近时,细胞必须发生显著的核形变才能穿越,这一过程在生理上模拟了细胞在组织间隙中的迁移状态。因此,在涉及核膜动力学或SUN蛋白复合体研究时,孔径选择需要特别审慎。

图1:Transwell迁移实验体系结构示意,上层细胞悬液室、多孔膜与下层趋化因子室的梯度驱动模型
2、趋化因子梯度建立的关键细节
趋化因子梯度的稳定性直接决定了实验结果的重复性。下室培养基中含有的FBS浓度通常设为10%至20%,但不同细胞系对血清因子的趋化响应差异极大。以MDA-MB-231为例,10% FBS已能产生显著趋化效应;而对于某些非侵袭性细胞系如MCF-7,可能需要使用特定趋化因子(如SDF-1α/CXCL12、EGF或IGF-1)替代或增强血清梯度。
梯度失稳是实验中最常见的问题来源之一。操作过程中,往小室中加入细胞悬液时如果速度过快或液滴高度过高,会产生瞬间压力差导致上下室液体交叉污染,梯度即刻被破坏。正确操作应当是将小室缓慢放入下室中,然后用枪头沿小室内壁缓慢加入细胞悬液,避免液体飞溅。此外,加入细胞悬液后尽量避免移动培养板,静置于37°C、5% CO₂培养箱中孵育。
实操建议:设置无趋化因子对照(下室使用无血清培养基)和完全培养基对照,两者的差值才能真正反映趋化因子驱动的定向迁移量,而非随机运动。
3、细胞密度与孵育时间的系统优化
上层小室中的细胞接种密度需要在预实验中确定。密度过低会导致穿膜细胞数太少,统计效力不足;密度过高则可能因细胞间接触抑制或营养竞争而改变迁移行为。通常推荐的起始密度为每孔1×10⁴至5×10⁵个细胞,具体取决于细胞系的增殖速率和迁移能力。
孵育时间同样需要根据细胞特性优化。快速迁移型细胞(如MDA-MB-231)通常12至16小时即可观察到显著穿膜;而迁移能力较弱的细胞系可能需要24至48小时。关键原则是:在最短时间内获得可计数的穿膜细胞(通常每视野10-100个),避免过长时间孵育导致细胞在下室膜面增殖,混淆迁移与增殖信号。
| 细胞系 | 推荐孔径 | 接种密度 | 建议孵育时间 | 下室FBS浓度 |
|---|---|---|---|---|
| MDA-MB-231 | 8μm | 2×10⁴/孔 | 12-16h | 10% |
| MCF-7 | 8μm | 5×10⁴/孔 | 24-36h | 20%+SDF-1α |
| A549 | 8μm | 3×10⁴/孔 | 16-24h | 10% |
| Jurkat T细胞 | 3-5μm | 1×10⁵/孔 | 3-6h | SDF-1α(100ng/mL) |
| U87MG | 8μm | 3×10⁴/孔 | 18-24h | 10% |
4、基质胶包被浓度与侵袭实验参数
在侵袭实验中,基质胶侵袭实验需要在Transwell小室膜面铺设一层Matrigel基质胶模拟基底膜。基质胶浓度通常为0.5-2.0 mg/mL,浓度越高,穿透难度越大。不同批次的Matrigel在蛋白浓度和生长因子含量上存在差异,建议同一实验项目使用同一批号。
包被操作的关键在于温度控制。Matrigel在4°C以下为液态,室温即开始凝固。因此,所有接触Matrigel的耗材(枪头、离心管、小室)必须预冷至4°C以下。包被后将小室置于37°C培养箱中30分钟使其凝胶化,然后轻轻吸除多余液体,用无血清培养基洗涤一次后备用。
常见陷阱:基质胶包被不均匀是最常见的问题,表现为膜面出现气泡或凝胶厚度不一致。这会导致同组内各孔间变异系数过大。解决方案是使用预先计算的体积(通常24孔板小室用50-100μL),均匀滴加于膜面中心,依靠表面张力自然铺展。
三、划痕修复实验的标准化与进阶应用
划痕修复实验以其操作简便、成本低廉且不需要特殊器材的优势,成为细胞迁移能力评估中使用频率最高的方法。然而,正是这种"简单"带来了标准化不足的问题,不同实验室之间的结果可比性较差。
1、单层细胞密度的精准控制
划痕实验的首要前提是获得完全融合的单层细胞。但"融合"的界定标准因人而异。严格标准应当是:相邻细胞之间形成紧密连接,肉眼观察无任何可见间隙,在显微镜下细胞覆盖面积达到95%以上。为达到这一标准,通常需要在划痕前24-48小时以合适密度接种细胞,使其在实验当天自然长满。
细胞密度对划痕修复速率的影响是多方面的。密度不足时,细胞需要先增殖再迁移,修复速率受增殖能力干扰;密度过高则可能因接触抑制导致细胞运动能力下降。更微妙的是,某些细胞系(如上皮来源细胞)在完全融合后会发生上皮-间质转化(EMT)相关的表型切换,这会直接影响迁移速率的生物学含义。
2、划痕宽度标准化与操作规范
划痕宽度是影响结果可重复性的核心变量。传统方法使用200μL枪头手工划痕,宽度通常在500-1000μm之间,但变异极大。改进方案包括使用规制的划痕模具(wound maker)、orifice培养插件或激光消融法。
在使用手工划痕时,确保以下几个细节可以大幅提升一致性:第一,使用统一规格的枪头(推荐200μL尖头),每次使用新枪头;第二,划痕时枪头垂直于孔板面,匀速沿直尺或标记线移动;第三,划痕后用PBS温和洗涤2-3次去除脱落细胞,每次洗涤后静置1分钟使残余细胞碎片浮起再吸除。
划痕宽度的初始测量应在洗涤后立即进行。使用显微镜拍照并配套标尺,在每个孔中选取至少3-5个固定位置拍摄0小时基线图像。这些位置需要在孔板底部用记号笔标记或在显微镜台坐标系统中记录,以确保后续时间点拍摄的是同一区域。
图2:划痕修复实验时间推移记录,0h至24h的间隙闭合过程与定量分析节点
3、血清饥饿与增殖抑制策略
划痕实验中区分迁移与增殖的贡献是一个经典难题。血清饥饿(通常使用0-1% FBS培养基)可以抑制细胞增殖,但过度饥饿可能导致细胞进入凋亡或表型漂移。折中方案是在划痕前进行6-12小时的血清饥饿,然后使用含低浓度血清(1-2% FBS)的培养基进行后续培养。
对于增殖活跃的细胞系,可以联合使用丝裂霉素C(mitomycin C,10μg/mL处理2小时)预先阻断增殖。但需注意丝裂霉素C本身可能影响细胞运动能力,因此需要在预实验中验证其对目标细胞系迁移速率的影响,设置只加丝裂霉素C不加趋化因子的对照孔。
关键区分:划痕修复实验与Transwell实验的根本区别在于,前者测量的是二维平面上的集体迁移(collective migration)能力,后者测量的是单个细胞穿越物理屏障的能力。当研究关注群体迁移行为(如上皮修复、血管生成出芽)时,划痕实验更贴合生理;当关注单细胞侵袭能力时,Transwell更合适。
四、基质胶侵袭实验的关键参数调控
基质胶侵袭实验在Transwell体系基础上增加了Matrigel层,使细胞必须通过蛋白酶降解和物理挤压才能穿越,更真实地模拟体内侵袭过程。但这一改动带来了额外的变量层,参数调控的复杂度显著增加。
1、基质胶浓度与侵袭难度的剂量关系
Matrigel浓度直接决定了侵袭难度。0.5 mg/mL的低浓度适合评估弱侵袭性细胞系或药物筛选中的相对变化;1.0 mg/mL是大多数肿瘤细胞侵袭实验的标准浓度;2.0 mg/mL及以上的高浓度则用于筛选高侵袭性亚群或评估强侵袭因子。
不同浓度下的侵袭细胞数差异可达一个数量级以上。在设计实验时,如果预期侵袭细胞数过少(每视野少于5个),应考虑降低Matrigel浓度或延长孵育时间;反之,如果细胞数过多(每视野超过200个),则应提高浓度或缩短时间。目标是使各实验组的侵袭细胞数落在10-100个/视野的范围内,既有足够的统计效力,又避免过密导致计数困难。
2、基质胶批次差异及其应对
Matrigel是从Engelbreth-Holm-Swarm(EHS)小鼠肉瘤中提取的细胞外基质混合物,其组成包括层粘连蛋白、IV型胶原蛋白、巢蛋白和多种生长因子(如EGF、IGF-1、TGF-β、PDGF等)。不同批次之间生长因子含量波动可达2-5倍,这会显著影响侵袭结果。
应对策略包括:同一实验项目使用同一批号Matrigel;在方法学部分注明批号和蛋白浓度;对于需要跨批次比较的实验,建议使用无生长因子Matrigel(growth factor reduced Matrigel),减少变量来源。另外,Matrigel的储存温度必须严格控制在-20°C,反复冻融超过两次会显著降低凝胶形成能力。
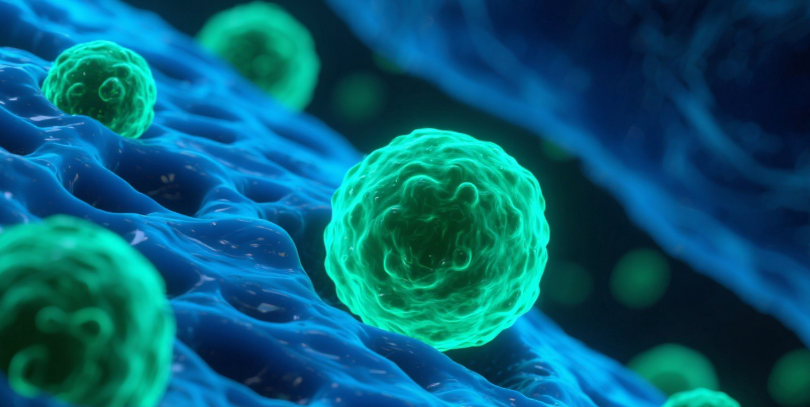
图3:细胞穿越Matrigel基质胶的侵袭过程示意,基底膜降解与三维穿越的动态模拟
3、侵袭实验与迁移实验的配对设计
在严谨的实验设计中,迁移实验(无Matrigel)和侵袭实验(有Matrigel)应当配对进行。通过比较两者的结果,可以区分细胞运动能力和基质降解能力对侵袭表型的相对贡献。如果药物处理组在迁移实验中无显著变化,但在侵袭实验中显著降低,则提示该药物可能作用于MMP(基质金属蛋白酶)通路或EMT过程。
这种配对设计在肿瘤转移机制研究中特别有价值。例如,在评估某个候选转移抑制基因的功能时,迁移和侵袭实验的分离表型可以帮助缩小下游通路搜索范围:迁移无变化而侵袭降低→关注ECM降解相关通路(MMP/TIMP);迁移和侵袭均降低→关注细胞骨架重组和运动相关通路(Rho GTPases/EMT);迁移降低而侵袭不变→提示可能存在代偿性蛋白酶上调。
五、时间lapse显微成像在迁移研究中的应用
传统的终点法实验(endpoint assay)只能记录起始和终止两个时间点的状态,丢失了大量动态信息。时间lapse显微成像通过定时自动拍摄记录迁移全过程,能够捕捉到传统方法无法获取的动态参数。
1、硬件配置与成像环境
时间lapse成像系统通常由倒置显微镜、自动载物台、环境控制舱和CMOS/CCD相机组成。环境控制舱需要维持37°C、5% CO₂和饱和湿度,这对活细胞长期成像至关重要。温度波动超过1°C即可引起细胞行为改变,CO₂浓度不稳定则会导致培养基pH漂移。
对于荧光成像,还需注意光毒性问题。荧光激发光每次照射都会对细胞产生不同程度的光损伤,长时间高频次曝光可能导致细胞凋亡或表型改变。优化策略包括:使用最低可行的曝光时间、增大间隔时间、优先使用低能量激发光、采用sCMOS相机提高量子效率以降低曝光功率。
2、拍摄参数优化与数据质量
拍摄间隔时间是核心参数。对于划痕实验,通常推荐每2-4小时拍摄一次,持续24-48小时;对于Transwell实验,由于小室膜面的焦距寻找困难,时间lapse应用相对受限,但可以使用特殊设计的低高度小室配合超长工作距离物镜实现。对于单细胞追踪实验,拍摄间隔需要缩短至5-15分钟,才能准确追踪细胞轨迹。
每视野拍摄的Z轴层数也需要优化。对于贴壁细胞单层,通常在聚焦面上下各2-3μm拍摄3-5层即可;对于三维基质胶中的侵袭细胞,可能需要在20-50μm范围内拍摄10-20层,然后进行最大密度投影(MIP)重建。
3、动态参数提取与表型量化
时间lapse数据的核心优势在于可以提取丰富的动态参数,包括:迁移速率(μm/h)、方向持续性(directionality ratio)、轨迹直线度(track straightness)、累计迁移距离(accumulated distance)、净位移距离(net displacement)等。这些参数是终点法实验无法获取的。
在肿瘤转移机制研究中,方向持续性是一个特别有意义的参数。高侵袭性细胞通常表现出更强的方向持续性(趋向于沿一个方向持续运动),而低侵袭性细胞则更多表现为随机游走模式。这一差异可以反映细胞内Rho/ Rac GTPase信号通路的活化状态,为机制研究提供线索。
技术提示:使用ImageJ的Manual Tracking插件或TrackMate插件可以实现半自动化单细胞追踪。建议每条件追踪至少30-50个细胞,以保证统计效力。追踪时注意排除即将分裂或正在死亡的细胞,这些细胞运动模式异常会干扰整体统计。
六、ImageJ迁移定量分析的系统方法
ImageJ作为开源图像分析平台,在细胞迁移定量分析中应用最为广泛。然而,不同研究者使用ImageJ的分析流程差异较大,导致同一组数据可能产生不同的定量结果。以下系统阐述标准化的分析流程。
图4:ImageJ迁移定量分析流程,阈值设定、掩膜生成与面积百分比计算的关键步骤
1、划痕实验的面积法定量
划痕实验最常用的定量方法是测量划痕面积随时间的变化。标准流程为:导入图像→转换为8-bit灰度图→设定阈值(threshold)将细胞区域与背景分离→应用阈值生成二值化掩膜→测量空白区域面积(即划痕面积)→计算划痕闭合率。
阈值设定是整个流程中最关键也最容易引入偏差的步骤。ImageJ提供多种自动阈值算法(如Default、Huang、Otsu、Triangle等),不同算法对同一图像可能产生不同结果。推荐在预实验中比较2-3种算法的分割效果,选择与肉眼观察最接近的算法,然后固定使用该方法处理所有图像。一致性比准确性更重要。
划痕闭合率的计算公式为:闭合率(%) = [(A₀ - Aₜ) / A₀] × 100%,其中A₀为0小时划痕面积,Aₜ为t小时划痕面积。也可以使用细胞覆盖面积百分比来表示:覆盖率(%) = [(Cₜ - C₀) / (总面积 - C₀)] × 100%,其中C为细胞覆盖面积。
2、Transwell实验的细胞计数法
Transwell实验的标准定量方法是计数膜底面的穿膜细胞数。常用染色方法包括结晶紫(0.1% crystal violet in 20% methanol,染色15-20分钟)、DAPI核染(适用于荧光显微镜)和Giemsa染色。结晶紫染色后,使用棉签小心擦拭膜上室面未穿膜的细胞,然后将小室倒置在载玻片上,用透明指甲油封片后在显微镜下拍照。
计数策略直接影响数据质量。推荐在每孔膜面选取5-9个随机视野(通常使用10×物镜),使用ImageJ的Cell Counter插件或Multi-point工具手动计数。如果细胞密度均匀且较高,也可以使用Analyze Particles功能进行自动计数,但需要预先设定细胞大小范围(通常50-500 pixels²)和圆形度阈值(0.3-1.0)。
注意事项:自动计数在细胞密集或聚团时准确度大幅下降。建议在预实验中比较自动计数与手动计数的结果,差异超过15%时仍应使用手动计数作为标准。
3、批处理与数据导出
当实验包含大量图像(超过50张)时,手动逐张处理效率低下且容易引入操作偏差。ImageJ支持宏命令(macro)批处理。一个典型的批处理流程包括:读取指定文件夹中所有图像→对每张执行相同的阈值分割和测量→将结果汇总输出到CSV文件。
编写批处理宏时需要特别注意文件命名规范。建议使用统一的命名规则(如"组名_孔号_时间点_视野号.tif"),便于后续数据解析和统计。输出的CSV文件可以直接导入GraphPad Prism或R语言进行统计分析和绘图。
在数据统计方面,迁移和侵袭实验的统计设计有特定要求。技术重复(同一孔的多个视野)应当取平均值后作为一个生物学重复数据点,而非直接进入统计。最终统计应当基于生物学重复(不同的孔或不同的实验批次),每组至少3次独立生物学重复。使用t检验(两组比较)或单因素ANOVA(多组比较),如果方差不齐则使用非参数检验(Mann-Whitney U或Kruskal-Wallis)。
七、肿瘤转移机制研究与迁移侵袭联合评价体系
肿瘤转移是一个多步骤级联过程,涉及原发灶细胞脱离、基底膜穿越、血管内渗、循环存活、外渗和远端定植。迁移和侵袭实验作为体外可模拟的环节,如何在肿瘤转移机制研究中发挥最大价值,需要从整体设计角度思考。
1、EMT标志物与迁移侵袭能力的关联分析
上皮-间质转化(EMT)是肿瘤细胞获得迁移和侵袭能力的核心机制之一。在评估EMT相关基因(如Snail、Slug、Twist、ZEB1等)功能时,迁移和侵袭实验是必不可少的表型验证手段。一个完整的EMT功能评估体系应包括:标志物表达检测(Western blot或IF检测E-cadherin下调和N-cadherin/Vimentin上调)、Transwell迁移实验、基质胶侵袭实验和划痕修复实验。
需要注意的是,EMT并非"全或无"的开关,而是存在中间态(部分EMT或E/M混合态)。不同EMT状态下的细胞可能表现出迁移和侵袭能力的解离,部分EMT细胞可能迁移增强但侵袭不变甚至降低,这取决于EMT诱导的主要通路(TGF-β vs. Wnt vs. Notch)。因此,在解读迁移侵袭数据时,应结合EMT标志物的具体变化模式,而非简单地将"迁移增加"等同于"EMT激活"。
2、药物干预评价体系的标准化
在抗肿瘤转移药物筛选中,迁移和侵袭实验是评估药物功效的关键表型读出。一个严谨的药物评价体系应当遵循以下原则:第一,设置多个浓度梯度(通常4-6个浓度),覆盖从无效到完全抑制的范围;第二,同时评估细胞活力(CCK-8或MTT法),排除因细胞毒性导致的迁移降低假阳性;第三,使用阳性对照药物(如GM6001广谱MMP抑制剂或XB31抗整合素抗体)验证系统灵敏度。
数据呈现方式应当同时包括绝对值和相对值。绝对值(如穿膜细胞数、划痕面积)反映实际效应量,相对值(相对于对照组的百分比)便于跨实验比较。IC₅₀计算应基于相对抑制率,使用四参数logistic模型拟合。
设计要点:在药物干预实验中,药物处理时间与迁移侵袭检测时间的关系需要精心设计。通常有两种方案,预处理法(药物处理24-48小时后收集细胞进行迁移实验)和共孵育法(药物与细胞同时存在于迁移实验体系中)。前者评估药物的长期效应,后者评估即时效应。根据药物作用机制选择合适的方案。
3、趋化因子梯度在转移靶向性研究中的应用
肿瘤转移的器官靶向性(organotropism)是当前研究热点。不同器官来源的趋化因子梯度被认为是决定转移靶向性的关键因素之一。在Transwell体系中可以通过在下室放置不同器官的条件培养基或特定趋化因子来模拟器官特异性趋化。
例如,在研究乳腺癌骨转移靶向性时,下室可加入骨组织提取物或CXCL12(SDF-1α,骨髓基质细胞高表达趋化因子);研究肺转移时,可加入CXCL16或CCL2;研究肝转移时,可加入CXCR4配体或IL-6。通过比较不同趋化因子梯度下迁移量的差异,可以评估细胞系对特定器官的趋向性,为体内转移模型提供体外预测依据。
4、多技术联合的数据整合策略
单一迁移或侵袭实验的数据说服力有限。当前高水平研究趋向于多技术联合验证策略:使用划痕实验评估群体迁移能力→Transwell迁移实验评估定向迁移能力→基质胶侵袭实验评估基质降解穿越能力→时间lapse成像提取动态迁移参数→ImageJ定量保证数据客观性。五种技术的数据整合可以构建一个多维度的迁移侵袭表型图谱。
在数据整合中,热图和雷达图是常用的可视化方式。将不同实验的标准化数据(Z-score)排列为热图,可以直观地展示不同处理组或不同细胞系在各维度上的表型差异。主成分分析(PCA)可以进一步降维,将多维表型数据映射到二维空间中,揭示细胞系或处理条件的聚类模式。
此外,迁移侵袭数据与分子数据的整合分析也越来越重要。将迁移速率与转录组、蛋白组或磷酸化蛋白组数据进行关联分析,可以发现驱动迁移表型的关键分子网络。例如,通过将迁移速率与激酶组磷酸化数据进行Spearman相关性分析,可以筛选出与迁移正相关的激酶通路,为后续机制研究提供候选靶点。
5、常见问题排查与质量控制
迁移侵袭实验的失败模式有一定规律可循。以下列举高频问题及其排查路径。
穿膜细胞数为零或极少:首先检查细胞活力(是否因血清过度饥饿或药物毒性导致凋亡);其次检查膜孔径是否合适(过大或过小都不行);再次检查趋化因子梯度是否建立(下室是否加了趋化因子);最后检查基质胶是否过厚或凝固不均。
组内变异系数过大(CV>20%):检查小室是否来自同一批次;基质胶包被是否均匀;细胞接种是否均一(特别是接种后是否立即移动了培养板导致细胞偏壁分布);染色和拍照条件是否一致。
对照组与处理组无差异:可能是系统灵敏度不足,尝试调整趋化因子浓度、细胞密度或孵育时间;也可能是处理因素确实不影响迁移侵袭,需要用阳性对照验证系统灵敏度后再下结论。
划痕实验修复速率异常快或异常慢:异常快可能因细胞密度未达融合、血清饥饿不充分或增殖贡献过大;异常慢可能因血清过度饥饿导致细胞活力下降、温度或CO₂条件不合适或细胞传代次数过多导致老化。
质量控制标准:每次实验应设置阳性对照组(已知迁移/侵袭增强条件)和阴性对照组(无趋化因子或迁移抑制剂处理)。阳性对照应显著高于阴性对照(p<0.05),否则该批次数据应视为无效,需要排查系统问题后重做。组内CV应控制在15-20%以内。
从更宏观的角度看,迁移侵袭实验的未来发展方向正在从单一终点法向实时动态监测过渡,从二维培养向三维类器官模型延伸,从光学显微镜向高内涵活体成像演进。研究者需要持续更新技术储备,在坚守实验质控基本盘的同时,积极引入新方法和新技术,才能在肿瘤转移机制研究的深水区获得更有说服力的数据。
 X