RNA合成技术:从固相化学到长链修饰RNA的制造路线
面向核酸药物与工具RNA研发的进阶制造路线、效率边界与工艺取舍
长链修饰RNA的制造已不再是单一技术问题,而是固相化学、酶学与连接化学三者之间的路线选择问题。当目标分子从21 nt的siRNA扩展到>100 nt的sgRNA乃至数千nt的mRNA,没有任何单一平台能同时满足位点特异性修饰、长度与批次一致性。本文从制造科学的视角,量化比较各路线的效率边界与工艺取舍,给出可执行的路线决策框架。需要预先说明:下文假定读者已掌握寡核苷酸与核酸酶学的基础概念,不再赘述引物、退火或中心法则等科普内容,直接进入工程层参数与量化讨论。
1、固相亚磷酰胺合成的工程细节与收率数学
亚磷酰胺固相合成是目前短至中长RNA(≤约120 nt)化学制造的主流。其四步循环,脱保护(Detritylation)、偶联(Coupling)、封端(Capping)、氧化/硫化(Oxidation/Sulfurization),的每一次循环都引入累积误差。设单步偶联效率为η、目标链长为n,则全长产物理论收率为ηn。这一指数关系对工艺窗口极其敏感,且对"平均η"的微小波动呈非线性放大。
在50 mer尺度,η=97%时η50≈21.8%,η=98.5%时≈47.0%,η=99%时≈60.5%,差距已超过一倍。但在120 mer尺度,差距被指数放大到灾难:η=97%时仅≈2.6%,η=98.5%时≈16.3%,η=99%时≈29.9%。这意味着,即便将偶联效率从98.5%提升到99%,120 mer的全长产率可翻倍,而停留在97%则基本失去制造可行性。因此工业界普遍把"99%偶联"作为长链化学合成的准入门槛,而非可选项;粗品中那30%的全长也仅是起点,后续还要被失败序列进一步稀释。
单步偶联本身的工程细节决定了η的上限。标准循环以亚磷酰胺单体(3'-亚磷酰胺、5'-DMT、碱基与2'-OH均受保护)在四唑或DCI活化下与载体上游离5'-OH缩合,生成不稳定的三价亚磷酯(P(III)),随后立即氧化为稳定的五价磷酸酯(P(V))或硫化为P=S。活化剂含水量、乙腈的含水量与酸度、单体溶解度(长链修饰单体常因疏水而析出的"CEM聚集"现象)都会把η压低0.5–2个百分点,这在短链无感,在120 mer却意味着收率腰斩。因此长链合成往往要额外增加偶联时间与单体当量,并以"DMT-off"比色法在每轮偶联后实时监测三苯甲基阳离子释放量,在线估算η并提前终止异常批次。
合成规模也影响η的实测值。实验室常用的1 µmol CPG柱与工艺放大的数毫摩尔载体,在试剂扩散、局部浓度与传热上差异显著;大柱常需提高单体脉冲体积与延长偶联停留时间,否则末端几步的η会系统性下滑。这也是为何"小试99%、放大掉到97%"在长链项目中屡见不鲜,放大不是简单的线性外推,而是流体力学与化学动力学的重新平衡,必须把传质限制纳入偶联效率模型而不是仅看单体纯度。
封端步骤常被低估,但它是纯化的真正压力源。封端失败率(1−c)在每轮留下未乙酰化的5'-OH,下一轮该链被延伸为n−1、n−2等缺失序列。以c=99%、n=50为例,全长方之外将产生约50种截短异构体,每种占~1%,它们与全长链仅相差一个苷酸,在反相色谱上保留时间极近,迫使HPLC纯化必须工作在极限分辨率,并显著拉低有效收率(所谓"表观纯度高、真实回收低")。提升封端至99.5%以上、并在偶联后引入二次封端(double capping),是将失败序列压到亚百分位的必要手段。
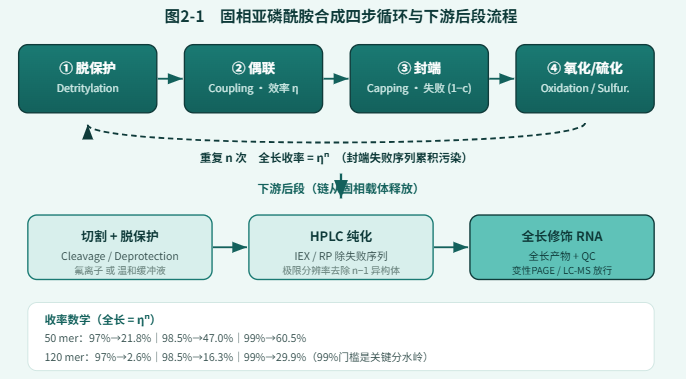
图2-1 固相亚磷酰胺合成四步循环(脱保护→偶联→封端→氧化/硫化)与下游切割、脱保护、纯化后段的完整流程。偶联效率η的指数累积决定全长收率,封端失效率决定失败序列的污染负荷。
2、2'-OH保护基化学的深度对比与工艺取舍
RNA区别于DNA的核心在于2'-OH,它既是活性的来源也带来合成灾难。围绕2'-OH保护基的选型,决定了化学合成的偶联上限、脱保护条件与产业适用性,也直接关联下游副反应谱。以下逐一比较六类主流策略。
TBDMS(叔丁基二甲基硅基)是金标准:位阻适中、偶联效率可达98.5–99%,但脱保护需氟离子(TBAF或Et3N·3HF),且长链上残留氟硅键会引发链断裂;其适用上限约120 nt,是短siRNA/反义寡核苷酸的最稳选择。一个常被忽视的细节是"脱硅滞后":在长链上TBDMS从末端向内部依次脱落,若缓冲液氟浓度不均,会出现部分脱保护的中间态,使产物呈多分散,从而给后续纯化制造假峰。
2'-TOM(三甲基硅基氧甲基)将硅基位阻外移,偶联效率可稳定>98.5%,但脱保护仍需氟,并未解决TBDMS的根本限制,其价值在于更干净的偶联动力学与更低的副反应背景。2'-ACE(乙酰保护基,2'-O-[(1-异丙基)甲酰氧基乙基])脱保护用温和的碳酸氢铵水溶液,偶联效率>99%,是达到99%门槛的代表方案,但其脱保护为一级动力学且对温度敏感,需HF专用设备或严格控温釜,工艺窗口窄。
2'-CEM([(2-氰基乙氧基)(二异丙基氨基)膦氧基]乙基)以新型保护策略把上限推到110–170 mer的纪录区间,是长链化学合成的突破点,但试剂成本与脱保护副反应管理要求高。2'-TC(三氯乙基氨基甲酸酯类)用乙二胺实现一锅法脱除,规避氟污染,适合对金属残留敏感的医疗级产品。2'-ALE(乙酰缩醛丙酮酸酯,acetal-linked ester)以DCI活化,可在微阵列与CPG两种载体通用,且用肼缓冲液实现与碱基/磷酸保护基同步脱保护,是并行高通量合成的优选。
综合取舍:能上氟设备且求稳选TBDMS;求长链纪录选CEM;求无氟温和脱保护选TC或ACE;求微阵列并行高通量选ALE。没有"绝对最优"的保护基,只有与目标长度、修饰图谱与设备能力匹配的最优解;保护基的脱保护条件(氟、酸、肼、胺)也决定了后段能否与酶促步骤无缝衔接。从产业落地看,保护基选择还受监管文件约束:氟残留(以Si-F或游离氟离子计)在注射级寡核苷酸中有明确限度,因此TBDMS路线必须配置严格的除氟清洗与残留检测(离子色谱或氟选择性电极);而TC/ALE的无氟路线在申报时可省去该论证,缩短CMC周期。这也是近年无氟保护基在医疗级产品中份额上升的结构性原因,而非单纯工艺偏好。
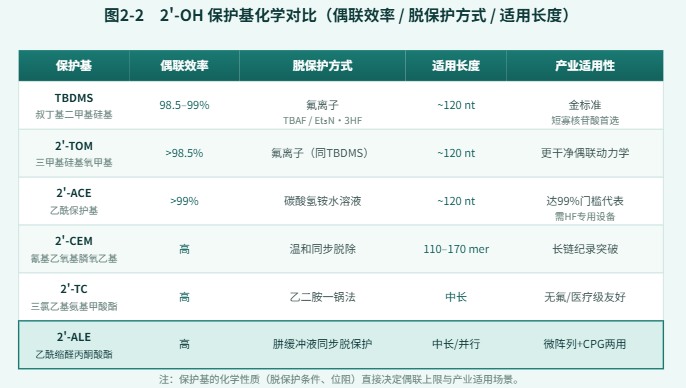
图2-2 六类2'-OH保护基(TBDMS / 2'-TOM / 2'-ACE / 2'-CEM / 2'-TC / 2'-ALE)在偶联效率、脱保护方式与适用长度上的对比。保护基的化学性质直接映射其产业适用场景。
3、副反应控制:磷酸迁移与主链断裂
即便偶联与封端都达标,脱保护阶段仍可能毁掉产物。在2'-OH被释放后,碱性条件下邻近的3'-磷酸酯可经五元环过渡态迁移至2'-位,形成2',3'-环磷酸中间体并导致链重排;若发生在内部位点,则生成难以与全长区分的异构杂质。这种3'→2'磷酸迁移是RNA后段处理最隐蔽的收率杀手,尤其在高浓度、高温、高pH下呈指数加速,并通过分子内转酯化把一条可翻译的RNA变为无功能的环状/开环混合物。
主链断裂的另一主因是碱基脱落(depurination/depys)引发的β-消除,以及长链在氟离子中的硅醚裂解副反应。硫代磷酸化路线还需面对硫化不完全问题:Beaucage试剂硫化生成P=S,但若反应时间不足或氧化剂残留,会出现P=O与P=S混合、甚至形成P(III)残留,导致产物电荷与手性复杂化,进一步增加HPLC纯化负担。这类"隐形杂质"在UV迹图上不可见,必须依赖LC-MS与核磁才能定性。
抑制策略包括:保持2'-保护基至最后一步、脱保护使用低浓度缓冲与低温(0–25℃)、严格控制pH避免强碱,以及对CEM/ALE类可在温和条件下同步脱除的方案优先采用。更进一步的工程对策是以"两步脱保护"(先温和去除碱基保护、再控速去除2'-保护)替代一步强碱法,可把环磷酸杂质从数个百分点压到检出限以下;脱保护时间最小化、对硅基路线采用Et3N·3HF而非强TBAF,并对切割后的寡核苷酸立即进行纯化捕获,避免长时暴露导致的主链断裂累积。值得强调的是,副反应谱与所选手性/硫代模式耦合:全硫代寡核苷酸在强碱脱保护时更易生成P=S→P=O回退与硫代位点选择性迁移,需把脱保护pH压到8.5以下并缩短时间;而硼代磷酸因B-H键对碱稳定,反而对两步温和脱保护更友好。因此"修饰类型"与"后段脱保护条件"必须联合设计,不能把RNA合成当成DNA流程的简单替换。
4、体外转录(T7)的能力边界
当长度越过150 nt,体外转录(以T7 RNA聚合酶为代表)成为唯一经济可行的量产平台。T7识别保守启动子(TAATACGACTCACTATA)并以5'→3'合成,可在数小时内产出自数百至数千nt的RNA,原料成本仅为化学合成的零头,是mRNA疫苗与长sgRNA的基石。其根本局限是缺乏位点特异性修饰能力:酶只能利用修饰核苷三磷酸作为底物整体掺入;例如将假尿苷三磷酸加入反应体系,得到的是全局假尿苷替换产物,无法在指定位点保留天然尿苷。这在需要"功能关键位点天然、其余修饰"的工具RNA中不可接受。
可掺入的修饰NTP包括2'-F-UTP、2'-OMe-NTP、生物素/荧光标记UTP等,但它们只能"均一替换"而非"定点布置"。更复杂的碱基修饰(如特定位点的5-溴尿苷或N1-甲基假尿苷)无法通过聚合酶定点实现,除非使用化学合成的短模板片段或酶法后修饰。因此IVT的修饰自由度本质上受限于"聚合酶底物谱",而非实验者的设计意愿。
T7还带来3'端异质性:转录终止不精确、再起始与流产产物使3'端呈多分散,并伴随少量5'三磷酸/短产物的混杂。工业解法有三类,其一,在模板3'端设计核酶(如HDV ribozyme)自切割生成均一末端;其二,DNAzyme或RNase H对特定序列定点切割;其三,以GMP或AMP作为启始剂引入5'端标记或强制单一起始。这些策略将3'异质性从±几个核苷酸压到单一位点,是IVT产品可放大的前提。此外,IVT副产的双链RNA(dsRNA)是先天免疫强激活剂,需经纤维素亲和(dsRNA清除树脂)或RP-HPLC去除;共转录加帽(如CleanCap)则把5'帽整合进转录而非后期酶法,提升效率并降低批间差。
工艺参数层面,典型IVT体系以40–80 mM各NTP、20–40 mM MgCl2、5–10 mM亚精胺与噬菌体T7聚合酶在37–50℃反应2–4 h;加入无机焦磷酸酶可及时清除焦磷酸、解除产物抑制,把产率再提升30–50%。但NTP过量会推高下游除盐负荷,且高浓度Mg2+易诱导dsRNA副产,故投料比需按目标长度与序列GC含量反向滴定,而非固定配方,这正是IVT从"能合成"走向"可申报"的关键工艺变量。
5、片段拼接路线:化学短片段 + T4 RNA连接酶
要同时满足"位点特异性修饰"与"长度>100 nt",主流路线是把长链拆成50–80 nt的化学合成短片段,再用T4 RNA连接酶(特别是T4 Rnl2,一种依赖DNA splint的dsRNA连接酶)拼接。连接位点为两个片段间的nick结构:5'片段的3'-OH与3'片段的5'-磷酸,在splint DNA的桥接下被酶催化形成磷酸二酯键。Rnl2为ATP依赖型,且供体片段需预腺苷化(pre-adenylated)以活化5'-磷酸;若改用具单链容忍性的T4 Rnl1,则需更长互补臂并容忍一定的非Watson-Crick区。
splint设计关键:两侧互补区各18–25 nt,熔点应略高于反应温度以保证退火,过长则自身折叠、过短则错配。此外,序列背景会引入"连接缺陷",GU富集或强二级结构位点连接效率骤降,需通过片段切分重排规避;连接缓冲中的PEG(crowding agent)与Mg2+浓度也需针对每个接头单独优化,经验配方往往无法跨序列平移。
连接动力学上,Rnl2对nick处的几何要求苛刻:两个片段末端必须严格共线与无错配,否则酶难以闭合并转移AMP。实践中常用"预退火+低温连接(16–25℃)+ 延长孵育(过夜)"的组合来逼近理论η;对含GU-rich的难连位点,可引入单碱基错配容忍的嵌合splint或改用Rnl1的更宽松识别窗口。连接后还需用核酸酶(如RNase H仅切DNA/RNA杂合或外切酶)选择性降解未反应片段,再行纯化。
多片段连接的效率崩塌是工程痛点:每个连接独立发生,三片段两连接的理论产率为η2,且中间产物积累导致副连接与串联错误。解法是对长链采用全splint覆盖策略,即用一条贯穿全长的splint提供连续模板,使多个nick被同时桥接,将串行连接转为并行,显著降低累积损失;也可引入分级splint(先连短模块、再连模块间)以平衡产率与复杂度。已报道案例包括100 mer部分修饰双链RNA的构建,以及将560 nt编码序列的化学-酶促拼接产物用于无细胞翻译系统,验证了该路线制造功能mRNA的潜力,它兼具化学合成的位点精度与接近IVT的长度上限。
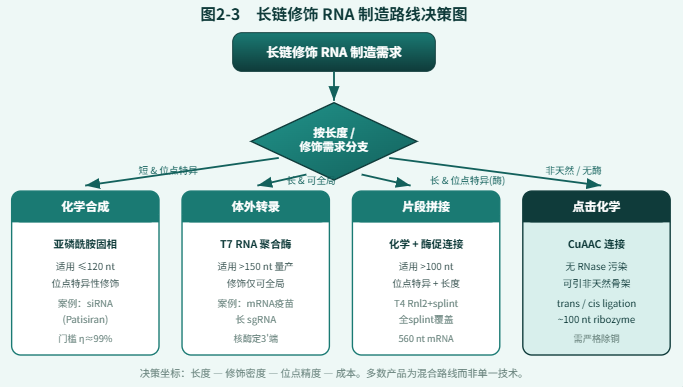
图2-3 长链修饰RNA制造路线决策图。依据目标长度与修饰需求,在化学合成、体外转录、化学片段+酶促连接、点击连接四条路线间分支决策。
6、点击化学连接(click RNA ligation)
点击化学(主要为Cu(I)催化的叠氮-炔环加成,CuAAC)提供了一条不依赖酶的拼接路径。通过在前体片段的碱基或核糖上预装叠氮与炔烃官能团,可实现跨碱基的trans-ligation与链内的cis-ligation。已用此路线构建出约100 nt的催化性核糖体酶(ribozyme),证明非天然连接方式足以维持高阶折叠与催化活性;修饰位点多选择在尿苷C5引入炔/叠氮,因其对碱基配对与堆积影响最小,且不与天然氢键网络冲突。
相比酶促连接,点击路线的核心优势在于完全无RNase污染风险、可引入天然体系不存在的非天然骨架与官能团,且对片段端基的化学兼容性更宽。为规避Cu(I)对RNA的氧化损伤与碱基配位,近年发展出无铜应变促进环加成(SPAAC)与四嗪逆电子需求Diels-Alder,可在生理条件下快速连接且无需金属,特别适合含硫代或敏感荧光标记的寡核苷酸。
从产物纯度看,点击连接避免了酶促体系中常见的连接酶自连、splint残留与RNase共纯化问题,粗品杂质量级更低;但其产物会引入一个三唑环"疤痕",若位于功能关键区(如ribozyme活性中心或sgRNA种子区)可能削弱活性,故官能团预装位点需避开结构敏感区,或通过cis-ligation把疤痕置于loop等非保守位置。代价是Cu(I)催化可能损伤敏感修饰、需严格除铜与脱盐,且当前规模化成本高于酶法。对于高价值、结构特殊的工具RNA,它是酶法之外的重要补充;在需要非天然骨架(如膦酸酰胺、肽核酸嵌段或位点特异性生物正交标记)的场景中,点击连接甚至是唯一可行路线,因其绕开了酶对底物骨架的严格识别限制。
7、化学修饰的稳定性工程
无论哪条制造路线,最终产品的血清稳定性与功能都依赖化学修饰核苷的化学改造。碱基修饰方面,5-溴/5-碘尿苷(5-Br/5-I-U)增强疏水堆积与卤键,用于晶体学与亲和力微调;5-甲基胞苷、假尿苷(Ψ)与N1-甲基假尿苷则调控免疫原性与翻译效率,其中N1-甲基假尿苷因显著降低TLR/RIG-I激活而成为mRNA疫苗的标配。
磷酸骨架修饰方面,硫代磷酸(PS)抗核酸酶但引入Rp/Sp手性异构体(每出现一处PS即令异构体数翻倍),硼代磷酸(boranophosphate)提供等电稳定且为电荷中性变体,可在不增加负电负荷的前提下提升核酸酶抗性。2'修饰方面,2'-F将血清半衰期从分钟级延长至小时级并提升刚性,2'-OMe平衡稳定性与翻译相容性,2'-MOE则用于长效反义寡核苷酸(如nusinersen)以延长组织滞留。
结构约束类修饰进一步拉开性能区间:LNA(锁核酸)每个残基抬升Tm约2–8℃,使短探针也能牢固杂交;PNA(肽核酸)完全脱离糖磷骨架而对核酸酶免疫;3'端封端(如3'-NH2、inverted thymidine或3'-磷酸)阻断3'外切酶,5'端磷酸化或硫代则影响与RNAi载荷的装载效率。在递送维度,化学修饰还需与偶联化学协同:GalNAc三触角配体通过三价与肝细胞去唾液酸糖蛋白受体结合,实现siRNA的肝靶向,其连接位点(3'端或特异性核苷酸)与PS/2'-修饰共同决定体内半衰期与脱靶谱;2'-O4'-C-亚甲基桥(locked 2'-O)与2'-MOE提供更高的核酸酶抗性与亲和增益;磷二硫代(phosphorodithioate)则在保持抗酶解的同时降低TLR激活,是PS的潜在替代。修饰工程因此是从"单体-寡聚-偶联-递送"的全链路优化,而非孤立的核苷选择。
工程权衡在于:修饰越多越稳定,却越可能损害靶结合动力学、翻译效率或免疫原性谱。以mRNA为例,5'帽、3' polyA与N1-甲基假尿苷的组合需在稳定性、翻译与先天免疫激活之间精细平衡,过量2'-O-甲基化会抑制核糖体进程,过量PS则增强TLR激活,故工具RNA的修饰密度必须按功能终点反推,而非简单堆叠。
8、纯化与分析质控
粗产物中的失败序列、截短体与盐类必须通过HPLC纯化去除。路线选择取决于负载物:离子交换色谱(IEX)按电荷/长度分离,适合长链与多电荷异构体;反相色谱(RP-HPLC)按疏水/修饰差异分离,适合短寡核苷酸与修饰富集样品。对于>100 nt产物,体积排阻或片段筛选常作为前置除盐步骤,以免高盐损坏色谱柱并拖尾。
工艺上,制备型HPLC需用挥发性缓冲液(如TEAA、HFIP/三乙胺),以便后续冻干除盐;反相捕获后常以超滤或凝胶过滤换入生理缓冲。纯度阈值因产品而异:siRNA通常要求>90%全长、单体相关物质<10%;mRNA则要求dsRNA<0.1%、完整性>70%且内毒素<10 EU/mg。递送相关的LNP包载前还需去除有机溶剂与游离脂质,故纯化并非单点操作而是多级串联。
QC环节三重保障:变性PAGE提供单核苷酸分辨的长度分布,是金标准但半定量;LC-MS给出精确质量与修饰组成确认,能直接判定失败序列与杂质分子量;对于长mRNA,毛细管电泳与测序级质谱联合使用。只有三者交叉验证,批次一致性才可视为达标,这也是监管申报对CMC(化学、制造与控制)的硬性要求,任何一条路线的最终放行都绕不开这套分析闭环。对于超长mRNA,传统制备HPLC的柱载与峰展宽成为瓶颈,工业上更多依赖亲和(oligo-dT捕获polyA)、氯化锂沉淀与切向流过滤的组合来替代高分辨反相;此时QC更依赖数字PCR定量、下一代测序对全长与截短比例做碱基级判定,以及动态光散射表征LNP粒径。分析策略本身已随产物长度而分化:短寡核苷酸靠色谱-质谱,长mRNA靠测序-粒径双轨。
9、产业视角:从Patisiran到mRNA疫苗
把上述技术映射到产品:Patisiran(Onpattro)作为首个获批siRNA药物,其21+23 nt双链采用2'-OMe/2'-F混合修饰、全硫代骨架与LNP递送,工艺确立了化学固相合成+氟脱保护+精密HPLC纯化的标准范式,证明长链化学制造的监管可行性。当需求来到sgRNA(>100 nt,需若干2'-OMe与硫代修饰以抗CRISPR效应蛋白降解),单一化学合成逼近上限,片段拼接或化学-酶促混合路线成为必选项,且其3'端的核酶切割均一化与IVT路径高度互补。
mRNA疫苗则走另一条路:以IVT量产kb级RNA,再通过5'加帽(共转录帽类似物或酶法加帽)、3' polyA尾(约100–120 nt)、以及N1-甲基假尿苷全局替换来压制先天免疫并提升翻译。它与化学合成的对比本质是"量产长度 vs 位点精度"的权衡:mRNA不必位点特异,故IVT胜出;工具RNA常需精确修饰分布,故化学与拼接路线不可替代。两者在"加帽效率、dsRNA残留、polyA均一性"上共享同一套质控语言,却因制造平台不同而解法迥异。
成本维度上,化学合成的单碱基成本基本恒定,故总造价随长度近线性上升,120 nt以上迅速失去经济性;IVT的单批成本对长度不敏感,长链反而摊薄固定投入,这是mRNA能以毫克级剂量上市的根本。未来可期的"混合制造"趋势是:以IVT产出骨架、以化学合成或酶法在少数关键位点嵌入不可酶促的修饰(如特定5-Br-U或磷二硫代),再用酶/点击连接封口,把每条路线的长板拼接成最低成本的功能分子。结论:未来长链修饰RNA的制造不会收敛到单一平台,而是以"长度—修饰密度—位点精度—成本"四维为坐标的路线组合。工程者的核心能力,是据目标分子画像在固相化学、体外转录、酶促拼接与点击连接之间做量化决策,而非追逐单一技术的极限。对研发者而言,最经济的路径往往是先用IVT验证序列功能,再在确需定点修饰的区段回退到化学合成或片段拼接,把每条路线的边界用在其最擅长的区间。
最新动态
-
09.28
表面等离子共振(SPR)实验避坑指南:从缓冲液优化到伪影辨别
-
09.28
酵母单杂交(Y1H)筛选:诱饵设计、假阳性治理与阳性结果验证体系
-
09.28
RNA Pull-down实验:探针设计、条件优化与结果深度解读
-
09.28
RNA合成技术:从固相化学到长链修饰RNA的制造路线
-
09.24
重组蛋白表达系统的工程化与纯化路径优化
-
09.24
表面等离子共振(SPR)技术在分子互作分析中的应用
-
09.24
qRT-PCR实验的优化与数据解读
-
09.24
DNA测序技术的进阶应用与临床转化
-
09.24
ELISA试剂盒定制开发与质量控制——从抗体制备到批间差控制,定制化检测方案
-
09.23
DAP-seq技术:从体外蛋白表达到Motif分析,植物转录因子研究的利器
 X